Вчені з’ясували як ядерні пори зберігають рухливий транспортний бар’єр
Дослідники описали роль importin-β та O-GlcNAc у підтриманні рухливого бар’єра ядерних пор у живих клітинах.
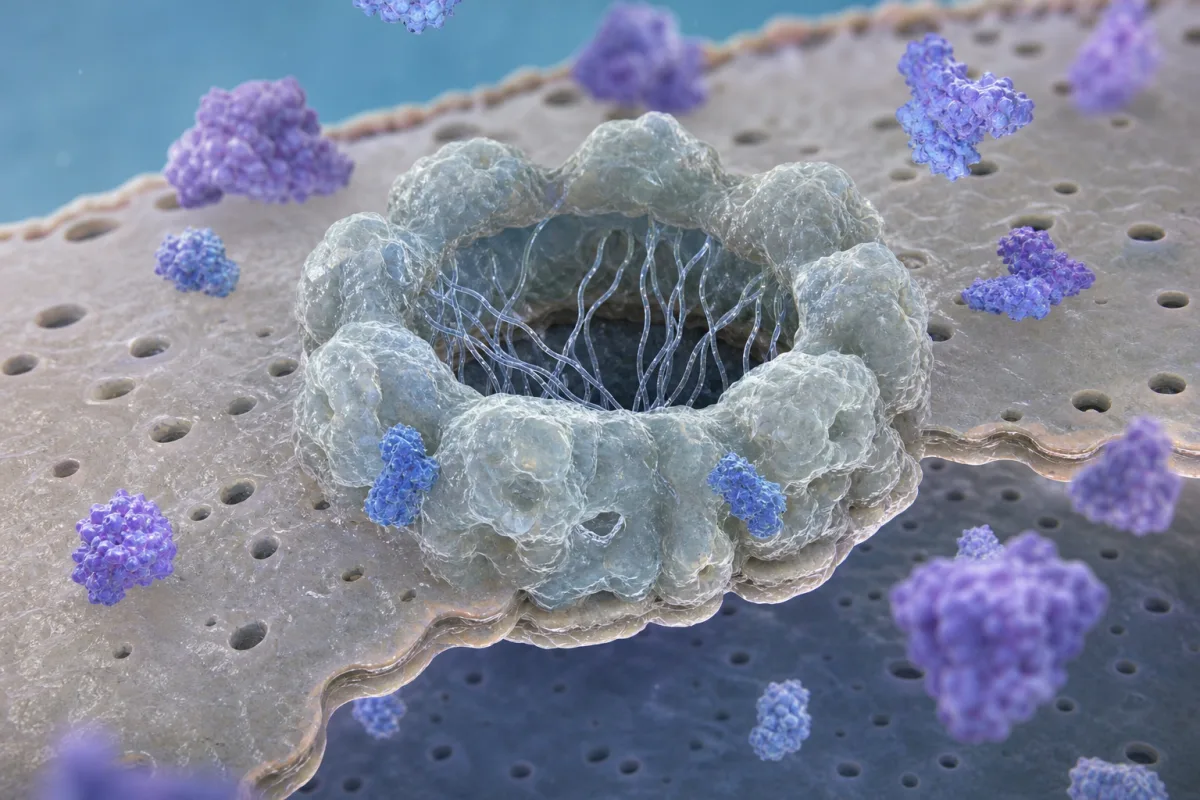
Дослідники встановили, що білок importin-β та модифікація O-GlcNAc спільно підтримують рухливий, рідиноподібний бар’єр у ядерних порах живих клітин ссавців. Цей бар’єр утворюють неструктуровані білки FG-NUP, зокрема NUP98: він пропускає малі молекули та забезпечує вибіркове перенесення більших вантажів між ядром і цитоплазмою. Про результати дослідження повідомляє Nature.
Автори застосували мічення NUP98 у визначених ділянках і пікосекундну флуоресцентну анізотропію, щоб виміряти локальну рухливість сегментів білка безпосередньо в живих клітинах. Вони дослідили 15 ділянок у двох FG-доменах NUP98. Сегменти, розташовані ближче до центру пори, рухалися швидше, тоді як біля ділянки закріплення на каркасі пори рухливість була більш обмеженою.
Відмінність між клітиною та лабораторним зразком
У живих клітинах показники рухливості NUP98 залишалися стабільними протягом двогодинного спостереження. Натомість очищені FG-домени NUP98, які утворювали конденсати in vitro, спершу демонстрували схожу рухливість, але приблизно за годину поступово переходили до більш твердоподібного стану. Цей процес супроводжувався уповільненням сегментного руху та появою амілоїдоподібних структур, виявлених за фарбуванням тіофлавіном T.
Зокрема, помітне зниження рухливості зафіксували в районі амінокислот 85–124 NUP98, який раніше визначали як схильний до агрегації. Такого переходу до гелеподібного стану в живих клітинах під час експериментів не спостерігали.
Роль importin-β і модифікації білків
Додавання importin-β до конденсатів NUP98 in vitro підвищувало рухливість FG-доменів і стримувало їхнє «старіння». За співвідношення importin-β до FG-домену від 1:1 до 4:1 виміряний часовий показник рухливості в ділянці 221 зменшився зі 120 ± 24 до 80 ± 7 наносекунди, наближаючись до значення 59 ± 14 наносекунди у живих клітинах. Водночас importin-β не міг повністю повернути рідиноподібну динаміку конденсатам, які вже дозрівали протягом години.
Комп’ютерне моделювання показало, що importin-β взаємодіє з FG-доменами, сприяє розширенню конденсатів і зменшує локальні контакти між схильними до агрегації ділянками NUP98. У живих клітинах зниження рівня O-GlcNAc уповільнювало рух сегментів FG-домену та ядерний транспорт, а надекспресія importin-β частково відновлювала обидва показники. Моделі також передбачають, що importin-β переважно концентрується на периферії ядерної пори, тоді як FG-домени простягаються до її центру.